2026-09-01 PE2のセクションにPE2* を追記しました。
2026-08-18 初稿
2019年に発表されたPE(Prime EditingまたはPrime Editor)は、塩基エディター(Base Editor: BE)の一塩基トランジッション置換の限界を超えて、一塩基トランスバージョン置換、挿入、欠失を高精度に修正できる画期的な技術です。ひいては、ClinVarに登録された7,000種類以上の病原性変異の多くに対応可能で [#1, 2]、異なるタイプの変異の多重修正への展開も期待されています。
2026-08-18 初稿
2019年に発表されたPE(Prime EditingまたはPrime Editor)は、塩基エディター(Base Editor: BE)の一塩基トランジッション置換の限界を超えて、一塩基トランスバージョン置換、挿入、欠失を高精度に修正できる画期的な技術です。ひいては、ClinVarに登録された7,000種類以上の病原性変異の多くに対応可能で [#1, 2]、異なるタイプの変異の多重修正への展開も期待されています。
PEの基本構成 [右図モデル図参照]
 Cas9ニッカーゼ(nCas9またはCas9nと表記):DNAの二本鎖の一方の鎖だけを切断するCas9バリアント
- 逆転写酵素(RT): RNAを鋳型にしてDNA配列を合成する酵素。
- PEガイドRNA(pegRNA): CRISPRーCas系に共通なガイドRNA(gRNA)に標的部位に挿入すべき遺伝子のRNA配列(RT template with edit)とプライマー結合部位(Prime Binding Site:PBS)を連結したRNA

PEの作用機序 [Wikipediaから引用した下図参照]
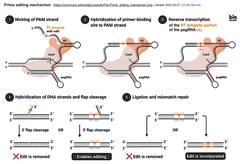
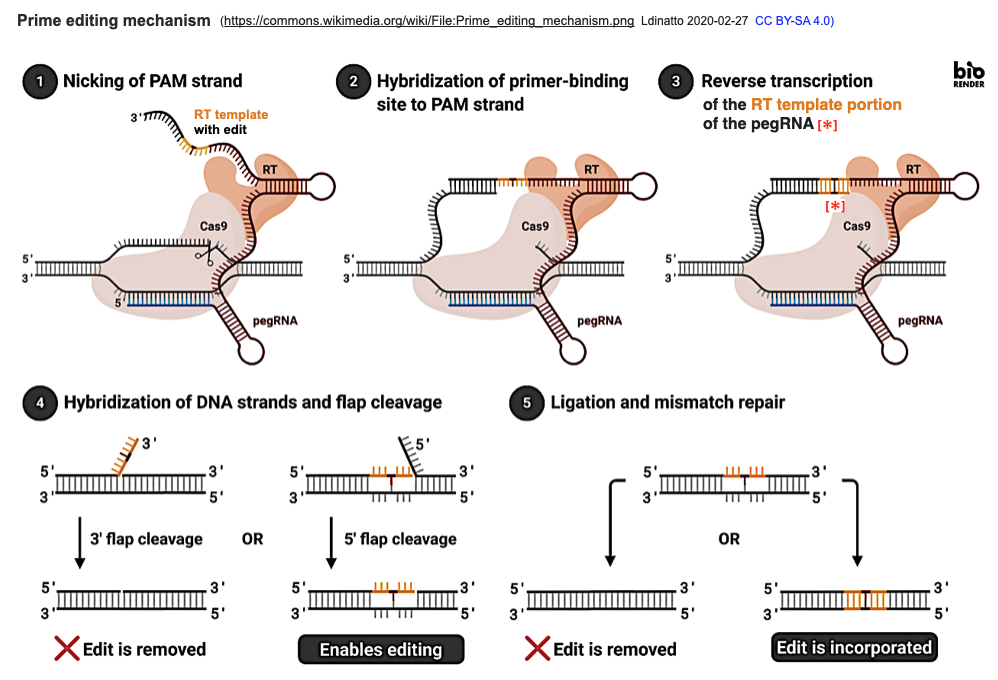
- Cas9n(ニッカーゼ)とpegRNA(prime editing guide RNA)からなるPE複合体が標的部位へ誘導され、PAM側のDNA鎖(PAM strand)にニック(一本鎖切断)を入れます。
- ニックによって生じたDNAの3'末端側一本鎖に、pegRNAのPBS(Primer-Binding Site)領域が相補的にハイブリダイズします。
- 逆転写酵素(RT)によってpegRNA上のテンプレート領域(RT template with edit)から新しいDNA鎖が伸長され、「3'フラップ(編集が入った新しい鎖)」が形成されます。
- 新たにできた3'フラップと競合する既存の5'フラップ(5' flap)が押し出され細胞内エンドヌクレアーゼ(FEN1等)で切除されることで、編集済みの3'フラップが元のDNAに取り込まれます。
- 5'フラップが切除された後、DNAリガーゼによって鎖が連結され、編集鎖と非編集鎖のヘテロ二重鎖が形成されます。これがミスマッチ修復(MMR)やその後のDNA複製を経て固定化され、両鎖に編集が反映されます。
なお、PEの作用機序については、Liuチームが2026年8月12日に Nature Biotechnology 誌から発表した「PEの解釈可能な編集結果予測モデルOptiPrime」の論文 [#3] の Fig. 1 にて詳細を確認できます。
さて、最初のPE(PE1)[#1] は、Cas9 H840Aニッカーゼに野生型のモロニーマウス白血病ウイルス(M-MLV)RTをのC末端に融合させたものでした。しかし、Liu研究室などによる技術革新を経て、現在では多種多様なPEツールが開発されています。そのうちの主要なツールについては、本記事の後半で、Addgeneのリポジトリから公開されているものを中心に紹介されています。
PEの利点
これまでのCRISPR-Casツールに必須のPAM配列からの制約が少ない
PAM配列はDNA鎖上の約8塩基対ごとに平均して出現するため、編集可能範囲(編集ウィンドウ)が8塩基対未満のBEの多くは、ゲノム上の「PAM不毛領域(PAM deserts)」を編集できませんでした。
一方、PEはPAM配列から近い位置だけでなく遠い位置も編集できるため、他の手法に比べてPAM配列の配置による制約を受けにくく、編集可能範囲を大きく広げます。PEでは、PAM配列から編集部位までの距離が30塩基対を超えることも可能です。
PEは塩基エディターよりも汎用性が高く、精密である(一定の条件下で)
BEも進化し、トランスバージョン変換も可能になりましたが、一部の変換には複数のステップや酵素を必要とします。一方、PEは、起こり得る12種類の塩基変換のいずれをも、単一の編集操作で実行できます。
また、PEはBEより精密です。例えば、BEは通常、編集ウィンドウ内にある標的以外の同一塩基を編集するバイスタンダー編集のリスクを伴っていますが、PEはpegRNAによって指定された特定の箇所のみを編集します。バイスタンダー編集が許容されない場合、PEを用いることでこれを回避できます。
ただし、BEの方が適している場合もあります。例えば、標的となる塩基が標準的な編集ウィンドウ内に位置している場合、PEよりもBEの方が効率が高く、インデル(挿入・欠失変異)の発生も少なくなります。
相同組換え修復(HDR)を介したゲノム編集よりも副産物が少なく、効率的
Cas9ヌクレアーゼによる二本鎖切断(DSB)を起点とする相同組換え修復(HDR)は、精密なゲノム改変を行う手法として広く利用されてきました。しかし、Cas9による切断効率は比較的高い一方でHDRの効率は低いため、Cas9によって生じたDSBの多くは非相同末端結合(NHEJ)によって修復されてしまいます。その結果、Cas9処理では主にインデルが生じ、HDRの効率は通常10%未満にとどまります。
これに対し、PEを報告した最初の論文 [#1] では、HEK293T細胞において約20~50%の効率が示され、インデルの発生率は1~10%でした。その後も技術革新が進み、PEの最大効率はさらに向上しています。
用途ごとの最適化は必要ですが、Cas9を起点とするHDRと比較すると、PEには、副産物インデルに対する「意図した改変」の比率が、ほぼ常に高くなるという利点があります。
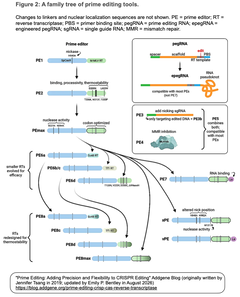
PEのファミリーツリー [Figuer 2引用下図参照]
PE1からPE8maxやxPE/vPEまでの進化の過程がまとめられています。
PE1からPE8maxやxPE/vPEまでの進化の過程がまとめられています。
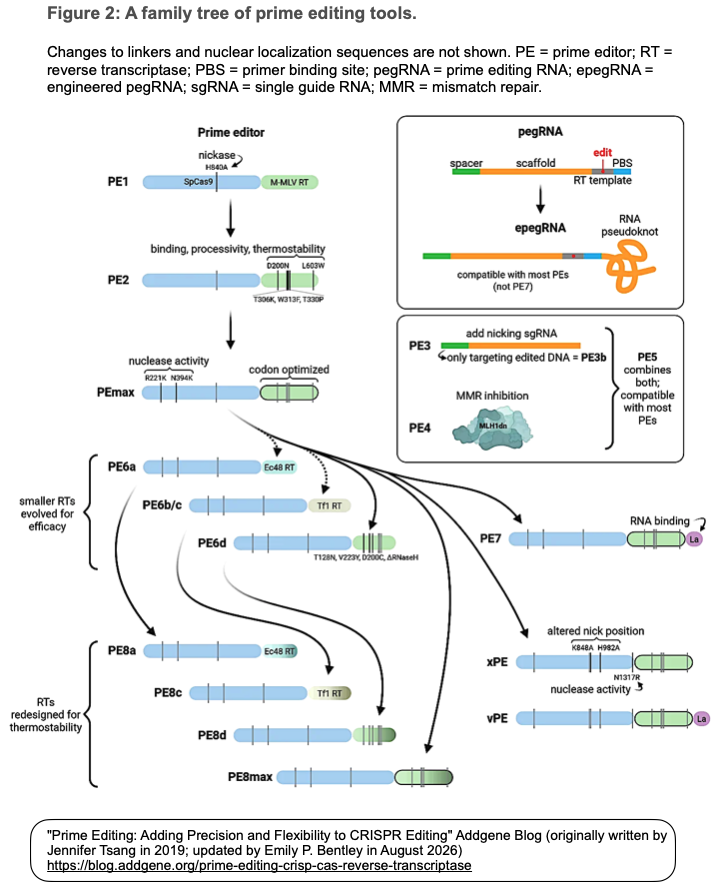
PEは精密かつ汎用性に優れていますが、最高の効率を得るには綿密な最適化が必要です。編集の種類、ゲノム上の文脈、送達戦略、細胞の種類、そして実験の目的といった要素は、それぞれ異なる制約をもたらす可能性があり、PEツールの選択や設計に影響を及ぼします。

ここからファミリーツリーに沿って、PEの主な進歩を見ていきます。

PE2:RTの効率向上 [#1]
Liuチームは、これまでのRTに関する研究を基に、活性の向上、鋳型とプライマー結合部位間の結合強化、プロセシビティ(連続合成能)の増大、あるいは熱安定性の改善をもたらすことが知られている変異を導入した19種類のPE1バリアントを作製・評価しました。
その結果、最も優れた性能を示したのは、M-MLV RTの5重変異体(pentamutant)を融合させたCas9ニッカーゼでした。LiuチームはこのシステムをPE2と名付けました。PE2は、様々なゲノム領域において、PE1と比較して平均2.3~5.1倍(最大で45倍)高い編集効率を示しました。
[注] PE2* [#15]
2021年に「N末端にc-myc NLSを、C末端に二重のNLS (variant BP-SV40 NLSとSV40-NLS)を、結合することで、核への移行をほぼ100%まで高めた」PE2*が、University of Massachusetts Medical Schoolの研究チームによって開発され、Nature Communications誌から紹介されました。
[注] PE2* [#15]
2021年に「N末端にc-myc NLSを、C末端に二重のNLS (variant BP-SV40 NLSとSV40-NLS)を、結合することで、核への移行をほぼ100%まで高めた」PE2*が、University of Massachusetts Medical Schoolの研究チームによって開発され、Nature Communications誌から紹介されました。
PE3:ミスマッチDNAを解消し、編集を優先させる [#1]
PEが一方の鎖に編集を導入すると、編集された鎖と元の配列が残るもう一方の鎖との間にミスマッチが生じます。編集が優先されるようにヘテロ二本鎖の解消を誘導するため、Liuチームは、以前にBEを開発した際に用いた戦略を採用しました。編集されていない鎖にニック(一本鎖切断)を入れることで、編集された鎖を鋳型としてその鎖を再合成するよう細胞に促すのです。
PE3は、追加のsgRNAを組み込むことでこのアプローチを実現しています。このsgRNAを用いて、プライムエディターは最初のニック部位から離れた位置にある未編集の鎖にニックを入れ(二本鎖切断=DSBの発生を避けるため)、編集効率を2~3倍に高めます。しかし、この「ダブルニック(二重ニック)」のプロセスは、インデルの形成をわずかに増加させます。
Liu研究チームはさらに、PE3bシステムのように、編集された鎖にのみ結合するスペーサーを持つsgRNAを設計することで、編集完了後にのみ未編集の鎖へのニック入れを誘導でき、インデル発生率を0.74%と13倍減少させました。
PE4およびPE5:ミスマッチ修復の改変 [#4]
PE3やPE3bであっても、PEの効率には大きなばらつきが生じることがあります。そのため、Liuチームはさらなる最適化を続けました。プール型CRISPRiスクリーニングを用い、細胞のミスマッチ修復(MMR)機構が、インデルを含む意図しない編集結果の多くに関与していることを突き止めました。
そこで、MMR複合体(MutSα–MutLα)の構成要素であるタンパク質MLH1のドミナントネガティブ変異体を設計しました。これによりMMRプロセスを一時的に阻害し、編集された鎖の情報を編集されていない鎖へとコピーする過程を促進させようとしたのです。同チームはこの手法をPE2およびPE3システムに適用し、それぞれPE4、PE5と命名しました。これらのシステムでは、編集効率がPE2と比較してPE4で7.7倍、PE3と比較してPE5で2.0倍に向上しました。
DNA修復を阻害することで、なぜ正確なヘテロ二本鎖の解消が可能になるのでしょうか?PEによって生じるヘテロ二本鎖は、MMRの中間体として認識されている可能性があります。その際、MutSα–MutLα複合体が、編集されたDNAフラップを選択的に切除したり、あるいはそのフラップが編集されていない鎖とハイブリダイズするのを妨げたりしていると考えられます。この複合体の働きを一時的に阻害することで、5'フラップ・エキソヌクレアーゼやDNAリガーゼが先に作用するための時間を確保できるのかもしれません。
PEmax:発現と活性を向上させるためのPE配列の最適化 [#4]
PEのプロセスを効率化する数多くの技術革新に加え、Liuチームは、PE2~PE5のいずれの手法とも組み合わせ可能な、改良型PE「アーキテクチャ」を開発しました。PEmaxには、ヒトコドンに最適化された配列を持つRT、追加の核移行シグナル、そしてヌクレアーゼ活性を向上させることが以前に示されているCas9の2つの変異が含まれています。PEのように複雑なシステムにおいては、構成要素すべてについて効率化することが必要になります。この最適化された酵素はPE2~5のいずれの手法でも使用可能であり、それらは「PE2max」、「PE3max」などと呼ばれることもあります。
PE6:特化型プライムエディティング・バリアント [#5]
2019年の論文発表から4年後、Liuチームは、最適化を図るべく、再びRTドメインに注目しました。より効果的なPEを創出するためにファージ支援進化法(phage-assisted evolution)を用いましたが、そこで生じた変異は標的とする編集内容に強く依存することが判明しました。そこで彼らは、用途に応じた様々な特化型プライムエディター(PE)を開発することにしました。
PE6aおよびPE6bは、それぞれ大腸菌(Escherichia coli )のEc48レトロンRTと分裂酵母(Schizosaccharomyces pombe )のTf1レトロトランスポゾンRTに由来するRTドメインを持つ、小型のPEです。小型化に伴い効率面でのトレードオフは生じましたが、短く単純な編集においては、いずれの酵素もPEmaxと同等かそれ以上の編集効率を示しました。
PE6cおよびPE6dは、それぞれTf1およびM-MLVのRT酵素をさらに進化させたもので、AAV(アデノ随伴ウイルス)による送達が可能なサイズでありながら、長鎖かつ複雑な編集においても高い効率を発揮します。
同チーム
はCas9ドメインに変異を導入したPE6e–gも開発しましたが、これらの変異による効率の向上は一部の編集に限られ、その効果も予測困難なものでした。しかし、PE6a–d由来の進化型RTドメインとPE6e–g由来の進化型Cas9ドメインを組み合わせることで、相加的な改善が見られる場合もありました。
はCas9ドメインに変異を導入したPE6e–gも開発しましたが、これらの変異による効率の向上は一部の編集に限られ、その効果も予測困難なものでした。しかし、PE6a–d由来の進化型RTドメインとPE6e–g由来の進化型Cas9ドメインを組み合わせることで、相加的な改善が見られる場合もありました。
epegRNA:安定性を向上させた構造化RNA [#6, 7]
Cas9やBEに利用されているsgRNAはCas9/dCas9との結合によって細胞内での分解から保護されていますが、pegRNAはRTのテンプレートおよびプライマー結合部位を含む長い3'末端(テール)を持っています。このテールは細胞内で分解されるリスクがあります。pegRNAは短縮されてもnCas9を標的部位へ誘導し、完全なpegRNAと標的部位への結合を競合することはできますが、PEによる編集を進行させることはできません。
Liuチームは3'末端を保護するために、RNAシュードノットを付加し、この長鎖RNAを「改変型pegRNA(engineered pegRNA)」、すなわちepegRNAと名付けました。RNAシュードノットの付加によりepegRNAの発現量が従来のpegRNAと異なる場合もありましたが、発現量が低下した状況下であってもプライムエディティング効率の向上が確認されました [#6]。
2026年、Liuチームは、広範なRNA配列空間からヒト細胞において機能する3'RNAモチーフを探索・同定および最適化するためのハイスループットプール型スクリーニング法 PE-PRISM(PE pooled reporter for identification of structured motifs)を開発しました。スクリーニングした候補の構造をさらに最適化することで、当初の設計よりも優れた性能を示す一連のepegRNAモチーフを報告し、その中でも特に3種類のモチーフ(HAV, eHAV, tevo2.0 epegRNAモチーフ)を多くの用途に推奨しています [#7]
PE7:RNA安定性への別のアプローチ [#8]
pegRNAの進化が進んでいる間の2024年に、プリンストン大学のBritt Adamson准教授が率いる研究チームが、CRISPRiスクリーニングを経て、真核生物で広く発現している低分子RNA結合性エキソヌクレアーゼ保護因子「La」がpegRNAの3'末端(テール)に結合し、それを安定化させることを明らかにしました。
Adamsonチームは、LaをPEmaxのC末端に融合させたPEをPE7と命名し発表しました。
PE7は、通常のpegRNAを用いた場合、PEmaxと比較して編集効率を大幅に向上させます。しかし、PE7とepegRNAを組み合わせた場合には、編集効率は同等か、あるいは低下する結果となりました。どちらのアプローチも有効ですが、ユーザーはいずれか一方を選択することになります。
PE8:RTドメインのフォールディングと発現の改善 [#9]
これまで、PEには数多くの最適化が施されてきました。しかし、あらゆる変異にはトレードオフが伴います。2026年、Liuチームは、近年のPEを構成要素であるRTドメインの不安定性を指摘しました。これは効率向上の代償として生じたものでした。その不安定さがタンパク質の発現量を低下させ、効率向上のメリットを相殺してしまっていたのです。
この問題に対処するため、同チームはタンパク質配列設計ツール「ProteinMPNN」を用い、PEmax、PE6a、PE6c、PE6dの配列を改変しました。その際、触媒残基や高度に保存された残基(これまでに導入されたほぼすべての変異を含む)の変更は制限しつつ、熱力学的安定性の向上を目指しました。
再設計された数百種類のタンパク質についてAlphaFoldによる検証を行い、PEとして組み上げた上でスクリーニングを実施しました。これには、治療応用が期待される脂質ナノ粒子(LNP)送達システムを用いた評価も含まれていました。
最も優れた性能を示したエディターは、それぞれの元となったエディターの名前にちなんで、PE8max、PE8a、PE8c、PE8dと命名されました。Ec48およびTf1に由来するPE8aとPE8cは、多数の変異が導入されていたPE6世代の対応するエディターと比較して、大幅な性能向上が見られました。一方、M-MLV由来のPE8dとPE8maxの改善幅はより緩やかなものでした。これはおそらく、この酵素にはすでにPE2世代において安定性向上を目的とした変異が導入されていたためと考えられます。
[注] crisp_bio [#9] で紹介している Nature Biotechnology 誌刊行論文 の FIg. 5 に、治療および研究用途におけるPE8s(PE8a; PE8c, PE8d)選択のフローチャートが用意されています。
未編集の5'フラップへの対処
標準的なPEでは、pegRNAの組み込んでおいた「RT template with edit」から逆転写されたDNAの3'鎖が元の5'ゲノム鎖を置換(排除)する必要があります [PEの作用機序の項の第4段階]。編集された鎖は元の鎖と配列が一致しないため、特に長い配列を編集する場合、この置換プロセスは熱力学的に不利となります。
この問題にはいくつかの解決策があります。複数の研究グループが「TwinPE」[#10]や「paired prime editing(一対のPE)」[#11, 12]を報告しています。これらは2つのプライムエディターを用いてDNAの相補的な鎖にそれぞれ編集を加える手法であり、細胞内のミスマッチ修復ステップを完全に回避します。
ミュンヘン工科大学のGil Gregor Westmeyer研究室で開発された「ExoPE」では、pegRNAにアプタマーを付加することでエキソヌクレアーゼを呼び寄せ、ゲノムDNAの5'フラップを除去します [#13]。この手法は、インデルを増加させることなく30塩基対以上の挿入配列の組み込み効率を向上させますが、特定のオフターゲット編集が増加するという側面もありました。
MITの研究チームは、Cas9によるニック(一本鎖切断)を入れる位置を改変することで、この問題に取り組みました。5'側のニック位置を末端から遠ざけて(ニックを入れた5'末端側の領域を長くして)おくと、その末端部分が分解されやすくなり、新たに編集されたDNAが入るためのスペースが生まれることで、インデルが減少することが示されました [#14]。チームはこれらのエディターを、それぞれ「very precise(高精度)」と「extra precise(極めて高精度)」なプライムエディターとして、「vPE」および「xPE」と名付けました。両者の唯一の違いは、vPEにはPE7と同様にRNA結合タンパク質であるLaが融合されている点です。
PEの現在地
ここまでPEの進化を辿ってきましたが、ここで、Addgeneは一連のPEsの名称、RT、Cas9、pegRNA、その他の仕様を、以下に示すような一覧表にまとめてくれています。
[注] 画像ファイルとしてアップしてあります。クリックしていだくと、別ウインドウにて拡大表示されると思います。
[#] 参考crisp_bio記事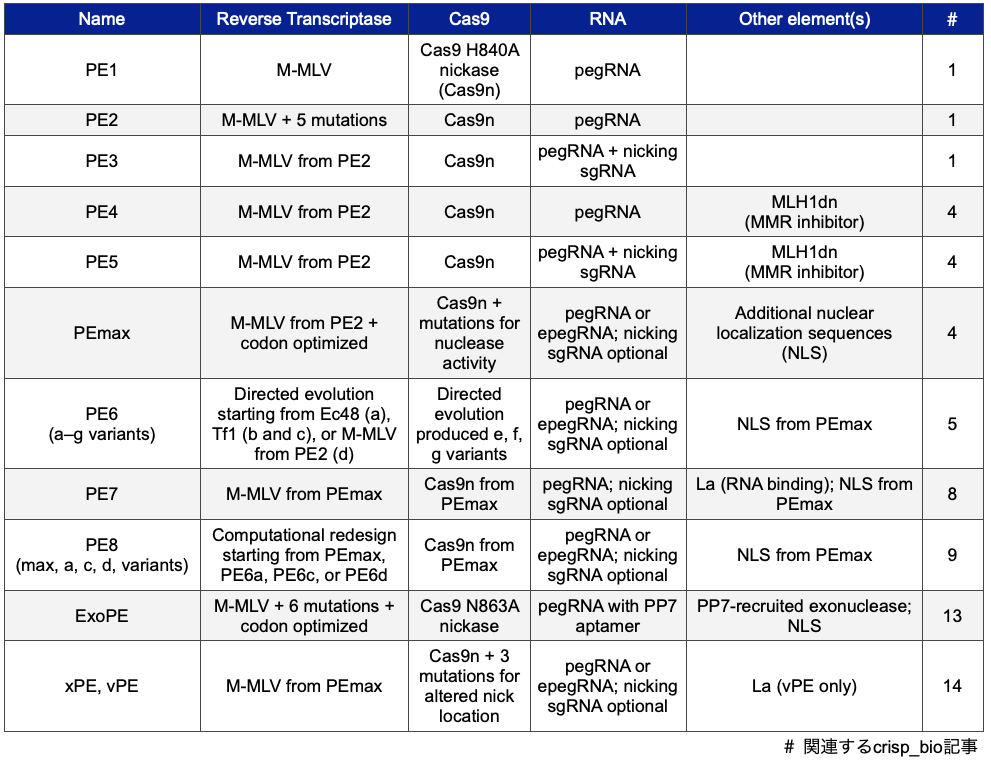
- 2019-10-22/2019-10-22 David R. Liuグループからプライムなゲノム編集法 - BEsに続くPEs. https://crisp-bio.blog.jp/archives/20458334.html
- 2019-11-12 David R. LiuがBase Editing (BE)とPE (Prime Editing)の比較を問われて答えた. https://crisp-bio.blog.jp/archives/20736096.html
- 2026-08-13 プライム編集(PE)の効率を正確に予測し、その仕組みも読み解く:David R. Liuチームのメカニズム駆動型AI「OptiPrime」. https://crisp-bio.blog.jp/archives/40688735.html
- 2021-10-07/2022-03-21 PE4/PE5: プライム・エディティングの効率と忠実度が,ミスマッチ修復過程の阻害によって,目覚ましく向上する. https://crisp-bio.blog.jp/archives/27581421.html;欧州チームとLiuチームの研究成果を併記
- 2023-09-02 プライムエディター (PE)、PEmaxを超えて第6世代 へ. https://crisp-bio.blog.jp/archives/33181269.html
- 2021-10-15 PEの編集効率を,pegRNAを改変することで改善. https://crisp-bio.blog.jp/archives/27671344.html
- 2026-05-22/07-01 プライム編集 (PE) の編集効率のさらなる向上が, pegRNAのさらなる進化を介して実現されました. https://crisp-bio.blog.jp/archives/40421076.html
- 2024-04-06 プライム編集 (PE) を改善する細胞内在因子を発見・利用. https://crisp-bio.blog.jp/archives/35449758.html
- 2026-05-28 プライムエディター(PE)のAI強化版が出ました - 指向性進化逆転写酵素を再設計. https://crisp-bio.blog.jp/archives/40442033.html
- 2021-11-15/2021-12-12 Twin PEと部位特異的リコンビナーゼにより,大規模なDNAの欠失,置換,挿入,および逆位を実現. https://crisp-bio.blog.jp/archives/27898465.html
- 2021-01-03/2021-10-15 PRIME-Del: プライムエディティング (PE2)のペアを利用することで、精密なゲノム領域削除を実現. https://crisp-bio.blog.jp/archives/25213281.html
- 2021-03-28 植物のプライム・エディティングの効率をpegRNAの最適設計と二重化によって〜17倍向上. https://crisp-/archives/25940220.html
- 2024-02-04 プライム・エディター (PE) にエキソヌクレアーゼ活性を組み込むことで、大規模配列 (> 30 bp)の挿入を促進. https://crisp-bio.blog.jp/archives/34953575.html
- 2025-09-21/12-03 これまでのプライムエディター (PE) に伴っていた InDelエラーを最小限にとどめることで, 極めて精密な編集を実現. https://crisp-bio.blog.jp/archives/39321300.html
- 2020-12-20/2021-10-29更新 Prime Editor (PE)の核移行効率を高めて,成体マウス体内で病因変異を修復し,肝癌モデルを作出. https://crisp-bio.blog.jp/archives/25080613.html
出 典
"Prime Editing: Adding Precision and Flexibility to CRISPR Editing" Addgene Blog (originally written by Jennifer Tsang in 2019; updated by Emily P. Bentley in August 2026) https://blog.addgene.org/prime-editing-crisp-cas-reverse-transcriptase
参 考
参 考
プライム編集については、ソウル大学校医科大学のSangsu Bae准教授が責任著者となっている詳細なレビューが2026年2月11日付でAdvanced Science誌から刊行されています:[レビュー] プライム編集の進化:効率向上と機能強化 (参考文献98件を含む17頁)


コメント