 北京を拠点とする中国のバイテク企業Qi Biodesign社の研究チームが、セリン・インテグラーゼに向けて、キメラ型付着部位(attachment site)を合理的に設計することで、部位特異的組換えを最適化する、DNAを中心とした戦略を開発し、さらに、Bxb1の触媒ドメインに改変を加えた単一タンパク質変異体と組み合わせる戦略とあわせて、その効果をNature Biotechnology 誌から紹介しています [右図は同社Webサイトの冒頭]。
セリン・インテグラーゼによる組み換えの弱点:標的DNAへの付着部位埋め込み
バクテリオファージに由来するBxb1のような大型のセリン・インテグラーゼに代表される部位特異的組み換え酵素は、精密なDNA組換えを触媒することから、細胞・遺伝子治療、植物育種における形質導入、および合成生物学の分野で極めて有用なツールとなっています。
セリン・インテグラーゼによる組み換えには、外来のDNA修復因子は不要ですが、標的領域に付着部位と称される一対の短い特異的配列(attPおよびattB)を必要とします。この付着部位の間で、精密なDNA組み換えが進行します。
2000年代初めにファージ由来のφC31インテグラーゼが哺乳類細胞のゲノムに見られる擬似付着部位を認識・結合することが見出されましたが、標的部位への組み込みを制御できなかったことから、標的領域に予め付着部位を配置しておく「ランディングパッド」の概念が実装されました。
一方で、このランディングパッドを配置するプロセスがセリン・インテグラーゼによる組み換えのボトルネックになっていました。その中で、プライムエディター(PE)の登場によって、ランディングパッドの埋め込みプロセスが一気に簡便化・精密化されました。
具体的には、PEを利用して、ゲノム上の「セーフハーバー(安全な挿入領域)」にatt部位を導入し、続いてセリン・インテグラーゼのBxb1を介して、もう一方のatt部位を含むドナーカセットを組み込むという手順がとられます [1, 2]。
PEによる付着部位埋め込みを介したBxb1による組み換え効率向上策
セリン・インテグラーゼBxb1自身の活性向上
これまで、指向性進化法やAI(人工知能)を用いた予測により組換え酵素タンパク質そのものを改変する試みが行われ、eeBxb1、epBxb1、reBxb1などの高活性変異体が開発されてきました [3, 4, 5, 6, 7]。しかし、高い活性をもたらす変異はしばしばDNA結合界面に集中するため、DNA認識特異性にも影響を及ぼし、意図しない部位への作用につながるリスクがあります。
セリン・インテグラーゼBxb1の認識部位の改変
Bxb1の活性向上のほかに、その認識部位であるランディングパッド(att配列)を改変することで、システムとしての活性を高める戦略もあり得ます。しかし、この目的のために個々の変異体をスクリーニングするには多大な時間と労力を要します。特に、att配列のうち短い方のattB配列であっても38塩基対(bp)の長さがあるため、理論上、網羅的なDNA変異体ライブラリを構築することは現実的ではありません。
自然界において、組換え酵素はしばしば一対の短いDNA配列を認識して四量体を形成し、それによって組換えを触媒します。したがって、組換え酵素は少なくとも4種類の天然配列を認識し得ると考えられ、それぞれの配列は異なる結合動態を示します [7]。そこで、研究チームは、既知の天然認識部位から最も有利な配列要素を合理的に組み合わせたキメラatt部位を設計することで、大規模なランダムスクリーニングの手間を省いて高活性なatt部位を獲得する手法を試みました。このアプローチにより、結合力の弱い部位の原因となる最適でない配列や、認識活性を全く示さない配列を戦略的に排除することが可能になりました。
最適なattB変異体を設計
- 研究チームは、標準的なattコンセンサス配列に基づき、144種類のattB変異体を合理的に設計しました。このライブラリーのすべての変異体がBxb1組換え酵素によって認識され、それぞれ異なる組換え活性を示しました。
- このライブラリから、ヒトおよび植物の両システムにおいて効率的な標的部位への組み込みを可能にする、高活性なattB変異体を単離しました。
- 改変型attB(V111)部位は、HEK293T細胞で51.9%(野生型attBの1.7倍)、イネプロトプラストで35.6%(野生型attBの4.4倍)の組み込み効率を達成しました。
最適化attB変異体にBxb1変異体を組み合わせた効果
- Bxb1の触媒ドメインに変異を導入した改変型単一タンパク質と組み合わせた場合、最適化されたシステムは、ヒト細胞においてCD19キメラ抗原受容体カセットで31%、オルニチン・トランスカルバミラーゼ発現カセットで25%の標的組み込み効率を達成しました。
- イネにおいては、これらの改変型変異体を用いることで、5.8 kbの除草剤耐性カセットを標的ゲノム領域へ組み込むことが可能となり、再生個体の24%で安定した組み込みが確認されました。編集された植物のナノポア・ロングリードシーケンシング解析により、高い特異性をもって完全かつ正確に挿入されていることが確認されました。編集された苗をT1世代の植物へと生育させることで、編集内容が次世代に遺伝することも確認されました。
こうして、キメラattとBxb1変異体を組み合わせることで、リコンビナーゼを用いたゲノム編集の効率をさらに高めるアプローチが示されました。
crisp_bioメモ:
- 2026年1月にNucleic Acids Research 誌から出版されながら、今回のNature Biotechnology 誌では引用されなかった「att配列短縮 x Bxb1活性向上」の論文がありました [8]。
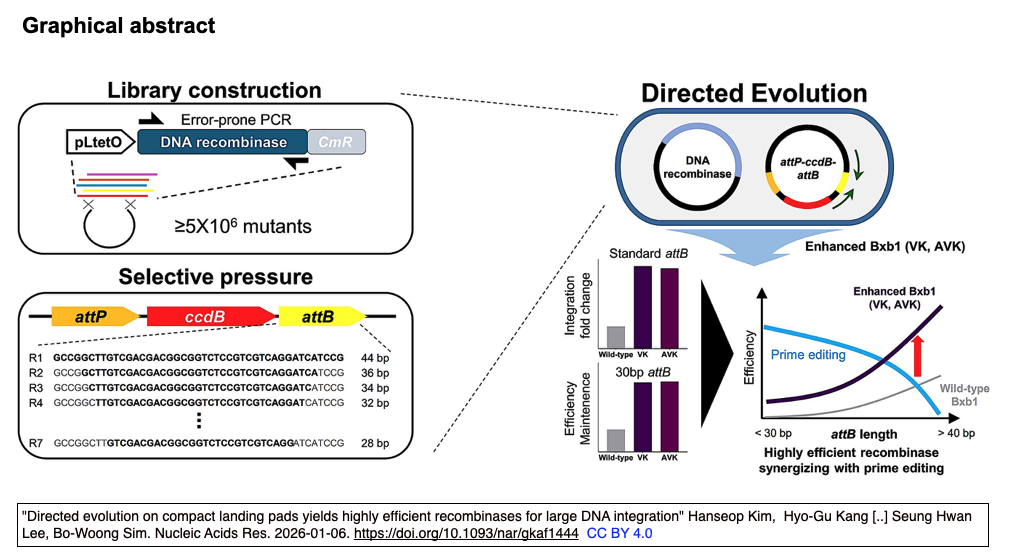
- 本記事で既に触れていますが、Bxb1を介した組み換え効率向上に、Bxb1自身の活性向上と、その認識部位であるランディングパッド(att配列)の改変の2つの戦略があり得ますが、ランディングパッドを埋め込むPEは、挿入する配列が短いほど効率が上がる一方で、セリン・インテグラーゼ自身の活性はatt配列が短いと下がるというトレードオフがありました。
- 中央大学校とKRIBBを主とする韓国の研究チームは、段階的に短縮したランディングパッドを選択圧として利用する、新たな指向性進化戦略を開発し、サイズを野生型の38 bpから30 bpまで短縮したatt配列でも活性が高いBxb1変異型インテグラーゼ(VKとAVK)(~4.3 kbのカーゴの挿入実現) を開発することで、トレードオフを解消しました [グラフィカルアブストラクト引用下図(特に、右下)参照(クリックすると拡大表示されます)]。
- HEK293細胞において、CCR5サイトとHEK3サイトにおいてそれぞれ野生型の〜1.9倍と~2.1倍 (編集効率 ~20%と~35%)の活性向上をもたらしました。
引用crisp_bio記事と論文
- 「Twin PEと部位特異的リコンビナーゼにより,大規模なDNAの欠失,置換,挿入,および逆位を実現」crisp_bio 2021-11-15/2021-12-12更新. https://crisp-bio.blog.jp/archives/27898465.html;"Programmable deletion, replacement, integration and inversion of large DNA sequences with twin prime editing" ; Twin PEとBxb1を組み合わせたシステムは、後にPASSIGE(prime-editing-assisted site-specific integrase gene editing)と称される。
- 「CRISPR指向性インテグラーゼを利用して、DSBを誘発することなく、巨大配列のノックイン"ドラッグ・アンド・ドロップ"を実現」crisp_bio 2022-11-29/2024-02-16更新. https://crisp-bio.blog.jp/archives/30891443.html;"Drag-and-drop genome insertion of large sequences without double-strand DNA cleavage using CRISPR-directed integrases"
- 「指向性進化法で得たリコンビナーゼとプライムエディターにより, 哺乳類細胞における巨大遺伝子の効率的な部位特異的統合を実現」crisp_bio 2024-06-12. https://crisp-bio.blog.jp/archives/36001760.html;"Efficient site-specific integration of large genes in mammalian cells via continuously evolved recombinases and prime editing."
- "Directed evolution of hyperactive integrases for site specific insertion of transgenes" Hew BE, Gupta S, Sato R [..] Owens JB. Nucleic Acids Res. 2024-07-02. https://doi.org/10.1093/nar/gkae534;IntePACE (15.7 kb therapeutic DNA cargo)
- "Engineered Bxb1 variants improve integrase activity and fidelity" Rose J [..] Kumar S, Cochrane JC. bioRxiv. 2024-10-21 (preprint). https://doi.org/10.1101/2024.10.21.619419;Bxb1セリンインテグラーゼ改変体を使用することで、オフターゲット挿入を低減しながら30 kb(30,000塩基対)を超える巨大なDNA断片を高効率かつ正確にノックイン
- 「EVOLVEpro:タンパク質 (proteins) の機能をin silicoで迅速に指向性進化させる法」crisp_bio 2026-03-16/2026-03-17更新. https://crisp-bio.blog.jp/archives/40190639.html;"Rapid in silico directed evolution by a protein language model with EVOLVEpro"
- "Synapsis in phage Bxb1 integration: selection mechanism for the correct pair of recombination sites" Ghosh P, Pannunzio NR, Hatfull GF. J. Mol. Biol. 2005-04-07/Jun. https://doi.org/10.1016/j.jmb.2005.03.043
- "Directed evolution on compact landing pads yields highly efficient recombinases for large DNA integration" Kim H, Kang HG [..] Lee SH, Bo-Woong Sim. Nucleic Acids Res. 2026-01-06. https://doi.org/10.1093/nar/gkaf1444
出 典
"Engineered genomic attachment sites for site-specific recombinases enable high-efficiency integration in plants and human cells" Linlin Yan(1) [..] Kevin Tianmeng Zhao(1,2). Nat Biotechnol. 2026-09-02. https://doi.org/10.1038/s41587-026-03294-y
- Qi Biodesign, Beijing, China.
- Corresponding author


コメント