[注] 合成輸送担体は原論文のSynthetic Transfer Vehicles(STVs)の仮訳
概 要
今回、ミュンヘン工科大学とヘルムホルツ・ミュンヘン傘下の研究所を主とする研究チームが、ウイルス・カブシドの構造を念頭において、生成AIで創製されたタンパク質複合体を機能化することで、進化の制約に縛られずに天然のタンパク質が持つ多様性の限界を突破した核酸輸送用担体を構築することに成功しました。
- AIで生成されたタンパク質複合体に天然のタンパク質ドメインを組み合わせることで、独自のサイズや形状を持つ100種類以上のボトムアップ型RNA輸送担体「STVs」を作製し、多角的にスクリーニングしました。
- スクリーニングの結果、広く利用されている既存の輸送担体と比較して、数桁高いRNA輸送効率を示すSTV-C8が同定されました。
- STV-C8の表面を、コンピュータ設計したペプチド結合因子で修飾することで、その標的指向性(トロピズム)をプログラムすることが可能であり、事実、治療上重要なRNAを多様な細胞モデルへと送達することに成功しました。
- STV-C8のマウス体内での生体内分布をほぼ単一細胞レベルの解像度で明らかにし、その安全性を確認するとともに、デュシェンヌ型筋ジストロフィーに対する遺伝子編集治療への応用を、患者由来細胞およびブタを用いて実証しました。
詳 細
合成タンパク質複合体の生成とスクリーニング
研究チームは、2024年ノーベル化学賞を共同受賞したDavid Baker博士が率いる研究チームが2023年にNature 誌から発表した論文"De novo design of protein structure and function with RFdiffusion" [crisp_bio 2022-12-07/2023-08-18更新参照]で紹介されていた一連の RFdiffusion(RoseTTAFold Diffusion)構造ライブラリーを出発点としました。
【AI創製構造 x 天然由来機能ドメイン】
はじめに、ライブラリーの中でも詳細に解析された正二十面体タンパク質複合体であるHE0902に、カプシド形成タンパク質の一部を構成する3つの機能ドメイン「膜結合ドメイン(membrain-binding domain、MBD)、後期出芽ドメイン(late-budding domain、L)、およびRNA結合ドメイン(RNA-binding domain、RBD)を融合させました [Fig. 1の一部引用下図 a, b 参照(クリックすると拡大表示されます)]。
この初期型STVコンストラクトと、対応するパッケージングシグナルを含むRNAをHEK293T細胞に導入し、STVを介した標的RNAの細胞培養上清への放出量を定量し、評価した結果、タンデム型PCP(tdPCP)を基盤としたSTVコンストラクトが最も高いカーゴRNAの輸送・放出効率を示しました [上図c参照]
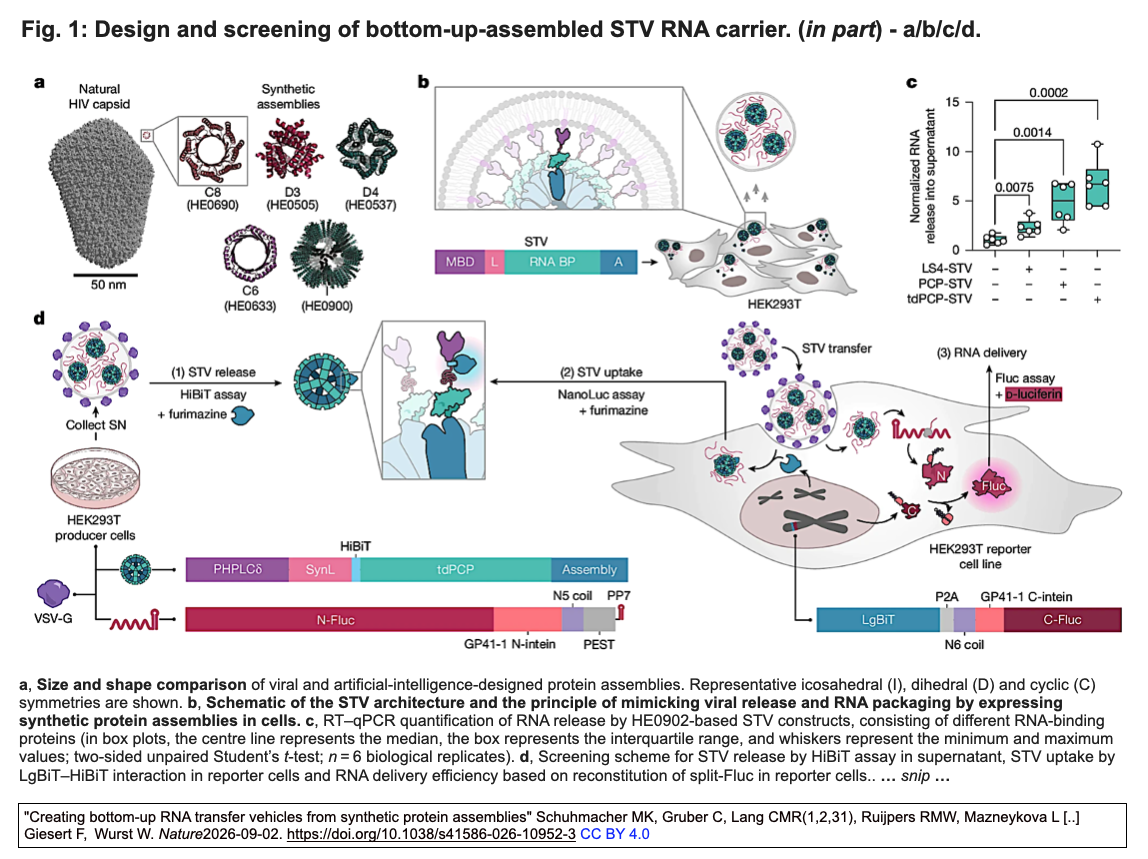
この初期型STVコンストラクトと、対応するパッケージングシグナルを含むRNAをHEK293T細胞に導入し、STVを介した標的RNAの細胞培養上清への放出量を定量し、評価した結果、タンデム型PCP(tdPCP)を基盤としたSTVコンストラクトが最も高いカーゴRNAの輸送・放出効率を示しました [上図c参照]
- MBD:ドブネズミ(*Rattus norvegicus*)由来ホスホリパーゼCデルタ(PLCδ)のプレクストリン相同性(PH)ドメインに由来
- SynL:天然のHIV p6 Lドメインの効率を上回る複数のウイルスの出芽モチーフを組み合わせた人工出芽ドメイン
- RBD:高親和性RBDであるPCP(PseudomonasファージPP7由来のコートタンパク質)
初期型STVの成果を受けて、研究チームは、非天然の対称性を帯びたSTVコンストラクトの評価に向かいました。
RFdiffusionライブラリー由来STVのスクリーニングと構造の追加設計
BakerチームのRFdiffusion論文では、二十面体(I)構造の「HE0902」だけでなく、二面体対称(D3, D4など)の「HE0490」「HE0537」や、巡回対称(C6, C8など)の「HE0626」「HE0690」といった非天然の対称性を持つ多量体構造(型番に"HE"が付くデザイン)が多数発表されています。研究チームは、これらをSTVのスキャフォールドとして利用し、前述の3つの機能ドメインを融合して39種類のSTVを構築しました。
研究チームは、(1) STVの放出(HiBiT/LgBiT)、(2) STVの取り込み(細胞内LgBiT補完)、(3) RNA移行効率(Split-Fluc再構成)という3つの重要な側面をモニタリングできるスクリーニング法を開発し、39種類を比較検証したところ、非天然の8回回転対称を持つ「HE0690(C8対称)」や二面体対称(D3)の構造が、初期型STVのベースとなった二十面体構造(HE0902)を大きく上回る送達効率を示すことが、明らかになりました。
研究チームは、最も優れた性能を示した構造であったHE0690と同じC8対称性を持つ集合体を、RFdiffusionを利用して、さらに30種類設計したところ、同じC8対称性に基づいて構築されたものの、配列や構造構成の面では極めて多様であり、パッケージング密度の変更や低免疫原性といった特定の特性を持つものをスクリーニングすることが可能なことが確認され、RFdiffusionを介したアプローチの拡張性が示されました。
機能性ドメインの拡張
研究チームは、STVの設計空間をさらに拡大するため、特定されたHE0690アセンブリドメインと、多様な膜結合ドメインのパネルを組み合わせました。これらの膜結合ドメインは、前述のR. norvegicus由来のPHPLCδドメインをテンプレートとし、FoldSeek [crispr_bio 2023-06-02参照] による構造ベース検索を介して選定しました。
全生物種を対象とした無制限検索、ヒトタンパク質を対象とした限定検索、およびESMAtlas [crisp_bio 2023-04-27参照] におけるメタゲノム由来タンパク質の検索により、計29種類のドメインを選定しました。
SynL-tdPCP-HE0690に膜結合ドメインを融合させたライブラリを作製し、STVの放出、取り込み、およびRNA転移効率に関する前述のスクリーニング手法を用いて評価しました。その結果、これまで機能が未解明であったPHドメインの一種である、Ursus americanus(アメリカグロ)由来の膜結合ドメイン(UaPHPLC)が、RNAのパッケージングおよび転移において極めて高い効率を示すことが明らかになりました。さらに、産生細胞内におけるUaPHPLC-STVの強固な膜局在を確認するとともに、標的細胞へEGFP mRNAを効率的に転移させる能力を実証しました。
こうして、UaPHPLCとSynL-tdPCP-HE0690から構成されるこのSTVコンストラクトをSTV-C8と命名し、以後の実証実験に使用しました。
既存の送達担体との比較
標的細胞へのEGFP mRNA導入効率について、一般的に用いられている遺伝子コード型送達システムであるVLP(ウイルス様粒子) [crisp_bio 2026-03-03参照]、エンベロープ型タンパク質ナノケージ(Enveloped protein nanocages, EPN)[Horns F et al., Cell 2023]、および天然のレトロトランスポゾンを再利用するSEND (Selective Endogenous Encapsidation for Cellular Delivery)[crisp_bio 2021-02-17/2023-02-17更新] を対照として比較を行った。
各送達システムについて、対応するパッケージングシグナルをEGFP mRNAに付加し、3種由来の4種類の細胞株を用いて送達効率を比較した。具体的には、各システムのコード配列をCAGプロモーター駆動型プラスミドの骨格にクローニングし、VSV-G、カーゴ、およびパッケージング用プラスミドを同量ずつHEK293T細胞に導入した。その後、3日間にわたり培養上清を回収・濃縮し、処理したサンプルを同量ずつ標的細胞に添加した。試験したすべての細胞株において、STV-C8を用いて送達されたEGFP mRNAが、標的細胞内で最も高いEGFP発現を示した。
同様に、Addgeneから入手したプラスミドを用いて各システムにCreリコンビナーゼをコードするmRNAをパッケージングし比較したところ、Cre mRNAにおいてもSTV-C8による送達が優れた効率を示した。
RNAキャリアとしてのSTV-C8をさらに評価するため、臨床で使用されているLNP(COVID-19ワクチンBNT162b2に用いられているイオン化脂質ALC-0315で構成)を対照として比較を行った。LNPおよびSTV-C8にパッケージングしたEGFP mRNAを段階希釈して標的HEK293T細胞に適用した結果、STV-C8を用いた場合の導入効率はLNPと比較して1,000倍以上高いことが明らかになった。さらに、特定のレベルのEGFPタンパク質発現を誘導するために必要なmRNA量を、STV-C8とLNPで比較・解析した。その結果、LNP送達mRNAと同等の発現を誘導するのに必要なmRNA量は、STV-C8の場合、LNPに比べて10,000分の1以下であった。
STV-C8コンストラクトの一部であるHibiTタグを利用することで、取り込みの動態をさらに詳細に解析することが可能になっています。STV-C8を処理したスプリットルシフェラーゼ(split-Luc)レポーター細胞に、生細胞用ルシフェラーゼ基質であるEndurazineを添加して標的細胞へのSTV-C8小胞の取り込みをモニタリングしたところ、取り込みは2~4時間後に開始し、10~12時間後に最大に達することが明らかになりました。
細胞モデルへのmRNA送達
- 多様な機能性カーゴの配送:AI(タンパク質言語モデル)で設計された新規ゲノム編集酵素「OpenCRISPR-1」[crisp_bio 2026-09-04参照 ]やプログラマブル抗ウイルス因子「Cas13d-NCS」[crisp_bio 2024-04-23参照]、神経前駆転写因子「Ascl1」など、多様な機能性mRNAの送達能力が実証されました。
- 三次元・複雑組織モデルへの浸透:ヒトiPS細胞由来の網膜色素上皮(RPE)スフェロイドにおいて、最外層だけでなく深部の細胞層までEGFP mRNAを到達・発現させ、立体組織への高い浸透力を示しました。
- 初代培養および浮遊細胞への高効率導入:遺伝子導入が比較的難しいヒト初代単球(浮遊細胞)やマウス初代皮質アストロサイトへ高効率に導入し、アストロサイトでは30%以上の細胞でASCL1タンパク質の発現を誘導しました。
- DMD疾患モデルでの遺伝子編集:デュシェンヌ型筋ジストロフィー(DMD)の治療アプローチとして、ジストロフィン遺伝子のエクソン51を標的とするCRISPR-Cas9システムをブタ初代線維芽細胞に送達し、約40%の標的エクソン欠失効率を達成しました。
動物モデルへのmRNA送達
- 単一細胞レベルの生体内分布解析:マウスモデルを用いたin vivo試験において、STV-C8粒子の生体内分布(バイオディストリビューション)を単一細胞に近い高解像度で視覚化・解析しました。
- 生体内安全性の検証:2種類の動物モデル(マウスおよびブタ)において投与後の安全性や免疫応答を評価し、生体内輸送キャリアとしての高い安全性プロフィールを確認しました。
- 大型動物での治療的アプローチ:ジストロフィン遺伝子からエクソン51を欠失させるCRISPR-Cas9システムをSTV-C8にパッケージ化し、ブタの筋肉に注入し、エクソン51の欠失が実現したことを確認しました。DMD患者由来の骨格筋細胞においても、同様にエクソン51の欠失が実現し、臨床応用の可能性が示唆されました。
crisp_bioメモ:
当初、AIで完結する論文だと思って読み始めましたが、天然由来の因子を利用して機能化するアプローチが登場して、論文の印象ががらりと代わりました。
一方で、著者らはアブストラクトおよび本文の冒頭で、「進化を経た最適化が、実験のツールの観点からは制約になる」、「AIで進化の過程を操作することで、その制約をうちやぶれるのではないか」という趣旨を述べていましたが、それが、ウイルス・カプシドの二十面体を超える生成AIを介した8回回転対称STVで見事に実証されました。
当初、AIで完結する論文だと思って読み始めましたが、天然由来の因子を利用して機能化するアプローチが登場して、論文の印象ががらりと代わりました。
一方で、著者らはアブストラクトおよび本文の冒頭で、「進化を経た最適化が、実験のツールの観点からは制約になる」、「AIで進化の過程を操作することで、その制約をうちやぶれるのではないか」という趣旨を述べていましたが、それが、ウイルス・カプシドの二十面体を超える生成AIを介した8回回転対称STVで見事に実証されました。
出 典
"Creating bottom-up RNA transfer vehicles from synthetic protein assemblies" Maren Kirstin Schuhmacher(1,2,31), Christoph Gruber(1,2,32), Christopher M. R. Lang(1,2,31), Ricardo M. W. Ruijpers(1,2,31), Lyupka Mazneykova(1,2,31) [..] Florian Giesert(1,2,27,32), Wolfgang Wurst(1,2,21,28,29,30,32) . Nature 2026-09-02. https://doi.org/10.1038/s41586-026-10952-3
- Institute of Developmental Genetics, Helmholtz Munich, Oberschleissheim, Germany.
- TUM School of Life Sciences, Technical University of Munich, Freising, Germany.
- Helmholtz Pioneer Campus, Helmholtz Munich, Oberschleissheim, Germany.
- Department of Bioscience, TUM School of Natural Sciences, Technical University of Munich, Garching, Germany.
- Institute for Tissue Engineering and Regenerative Medicine, Helmholtz Munich, Oberschleissheim, Germany.
- Deep Piction, Munich, Germany.
- Institute of Virology, Helmholtz Munich, Oberschleissheim, Germany.
- Large Animal Models in Cardiovascular Research, Klinik und Poliklinik für Innere Medizin I, Klinikum rechts der Isar, Technical University Munich, Munich, Germany.
- Center for Innovative Medical Models, LMU Munich, Munich, Germany.
- Department of Pharmacy-Center for Drug Research, LMU Munich, Munich, Germany.
- Institute of Computational Biology, Helmholtz Munich, Oberschleissheim, Germany.
- Department of Mathematics, TUM School of Natural Sciences, Technical University of Munich, Garching, Germany.
- Metabolomics and Proteomics Core, Helmholtz Munich, Oberschleissheim, Germany.
- First Department of Medicine and Regenerative Medicine in Cardiovascular Diseases, Klinikum rechts der Isar, Munich, Germany.
- TUM School of Medicine and Health, Technical University of Munich, Munich, Germany.
- Institute for Synthetic Biomedicine, Helmholtz Munich, Oberschleissheim, Germany.
- Laboratory for Retinal Gene Therapy, Department of Ophthalmology, University Hospital Zurich, University of Zurich, Schlieren, Switzerland.
- Department of Surgery, TUM University Hospital Rechts der Isar, Munich, Germany.
- Wellcome Trust Sanger Institute, Wellcome Genome Campus Hinxton, Saffron Walden, UK.
- Institute for Stroke and Dementia Research, Medical Centre of the University of Munich, LMU Munich, Munich, Germany.
- Cluster for Systems Neurology (SyNergy), Munich, Germany.
- Graduate School of Neuroscience (GSN), Munich, Germany.
- Klinik und Poliklinik für Innere Medizin I, Klinikum rechts der Isar, Technical University of Munich, Munich, Germany.
- DZHK (German Center for Cardiovascular Research), partner site Munich Heart Alliance, Munich, Germany.
- Department of Chemistry, TUM School of Natural Sciences, Technical University of Munich, Garching, Germany.
- Helmholtz Munich Cryo-Electron Microscopy Platform, Helmholtz Munich, Oberschlessheim, Germany.
- Institute of Stem Cell Research, Helmholtz Munich, Oberschleissheim, Germany.
- Deutsches Zentrum für Psychische Gesundheit (DZPG), Site Munich-Augsburg, Munich,Germany.
- German Center for Neurodegenerative Diseases (DZNE), Munich, Germany.
- Emeritus of Excellence Senior Faculty (SEF), Technical University of Munich, Munich, Germany.
- These authors contributed equally: Maren Kirstin Schuhmacher, Christoph Gruber, Christopher M. R. Lang, Ricardo M. W. Ruijpers, Lyupka Mazneykova.
- These authors jointly supervised this work


コメント