CRISPR分野において、近年、大規模編集ツールの研究開発が加速されていますが、よりコンパクトでより高性能なシステムの研究開発も引き続き盛んに行われています。今回のブログ記事は、腸内細菌由来の超小型Cas12f(400 aa)の発見に続くタンパク質言語モデル(ESM-1b)・構造解析・飽和変異誘導実験などを経て、標的遺伝子の転写活性化とエピゲノム・エディターのプラットフォームとして実用になるバリアントCasNano(dCasNano)に至ったスタートアップ企業Epitor Therapeutics,とコロンビア大学の研究成果を紹介しています。
詳 細
BlCas12fの発見
今回、エピゲノム編集を追究しているEpitor TherapeuticsのYi-Ting Tsai研究部長とコロンビア大学のX. Shawn Liu助教が率いる研究チームが、腸内嫌気性細菌のBlautia lenta由来の400 aa(アミノ酸残基)という最小限のサイズを持つCas12fタンパク質(BlCas12f)を改変し、超小型かつ汎用性の高いCRISPR-Casプラットフォームを開発し、CasNanoとしてMolecular Therapy - Nucleic Acids誌から発表しました。
研究チームは一連のCas12fファミリータンパク質をスクリーニングし、BlCas12fを発見し、認識するPAM配列として「5’-CCN-3’」を同定しました。このPAM配列は、多くのCas12a/fタンパク質が認識するATに富むPAMとは対照的であると同時に、SpCas9の「NGG」PAMとは相補的な関係にあります。ここで特に重要なことは、GCリッチなPAMは、「プロモーター領域やCpGアイランドなど、遺伝子発現制御領域に多いGC多量領域へアプローチしやすい」というエピゲノム・エディターにつながっていく点です。
BlCas12fのヌクレアーゼ活性は非検出、dBlCas12fの活性も低調
野生型BlCas12fについて、天然のcrRNAおよびtracrRNAと組み合わせた際のヌクレアーゼ活性を検証しましたが、哺乳類細胞内での二本鎖DNA切断活性はほとんど検出されませんでした。これは、エピゲノム・エディターへの展開を目指している研究チームにとっては、ゲノム配列を改変するリスクを伴うことなくエピゲノム制御が可能になるという意味でむしろ、好都合な特性でした。
そこで、転写制御への利用を目的として、ヌクレアーゼ活性を不活性化したバージョン(dCas)を作製しました。具体的には、UnCas12fおよびAsCas12fにおける触媒活性に重要な残基との配列アラインメントに基づき、D216AおよびD390A変異を導入しました。
しかし、dBlCas12fバリアントに転写活性化ドメインVPRを融合させ、天然のcrRNAとtracrRNAをGAAAリンカーで連結した合成シングルガイドRNA(sgRNA)と共発現させましたが、レポーター活性化もまた、ほとんど示されませんでした。
dBlCas12fの強化
研究チームは、このdBlCas12f-VPRの骨格を直接用いて、構造情報に基づくタンパク質変異導入とsgRNAの体系的な最適化という多段階の戦略により、高活性なdCasNanoに到達しました。 [その手法は『補足』の項にて詳述]
- 触媒活性を欠損させたCasNano(dCasNano)にVPRドメインを融合させた場合、同量のプラスミドを用いた導入条件下での検証において、試験したgRNAおよび標的遺伝子座のいずれにおいても、標準的なdSpCas9をベースとするCRISPRaと同等かそれ以上の効率と特異性で内在性遺伝子を活性化しました。ただし、エディターの発現量は定量されておらず、また化学量論的な差異により厳密な比較は困難であるため、これらの比較は本質的な酵素活性ではなく、機能的な出力結果を示すものです。
- さらに、dCasNanoにDNAメチル基転移酵素(DNMT3A)を融合させることによる遺伝子サイレンシングと、ジオキシゲナーゼ(TET1)を融合させることによる遺伝子活性化を確認し、双方向的なエピゲノム編集を可能にする汎用性も実証しました。
- TET1による再活性化効果はヒトES細胞(hESC)において5ヶ月間持続しましたがDNMT3Aによって導入されたメチル化は、細胞分裂を伴うレポーター細胞株において2週間後には消滅しました。
CasNanoの小型なサイズと特徴的なCCN PAM配列は、ウイルスベクターの積載容量による制約を受ける将来の治療応用において、大きな可能性を秘めています。
補 足:dBlCas12fからdCasNanoに至るタンパク質工学
- はじめに、構造に基づく解析(具体的には、BlCas12fと、AsCas12fやUnCas12fといった特性がよく解明されている他のCas12fタンパク質との配列および構造のアラインメント)と、タンパク質言語モデル(ESM-Scanツールを介して利用したESM-1bモデル)を併用し、22個の候補残基を特定しました。
- この候補残基を、アルギニン置換またはESM-1bモデルによって予測された変異体への置換により評価し、さらに、飽和変異導入実験による評価を加えました。
- 続いて、候補変異の相乗効果を評価するにあたって、V1(N195K)を起点として、段階的に変異を追加することで、V2(Y306K)、V3(T307K)、V4(S131C)、V5(E181Q)、そして最終的にV6(D183T)を作製しました。その結果、野生型dBlCas12fと比較して活性が約600%向上しました。
- さらに、Cas12aファミリーとの構造比較により、注目すべき6つの残基が特定され、それらに対して飽和変異導入を行い、最適な置換を探索しました。これらの有用な変異をV6骨格に導入し、一連の新規バリアント(V7(I10R)、V8(I159R)、V9(D76K)、V10(G111N)、V11 (I196V))を作製しました。その結果、V11が最高の活性を示し、活性化能は2倍に向上しました。この最終的な高活性バリアントが「dCasNano」と命名されました。
- ヌクレアーゼ活性を持つV11骨格に最適化されたsgRNAスキャフォールドを組み合わせた場合、弱い切断活性が回復したのに対し、dCasNanoにD216AおよびD390A変異を導入することで、その活性が完全に消失することを確認しました。
参 考:Cas12f1改変関連crisp_bio記事
- コンパクトなCas12f (Cas14a)から,哺乳類細胞でゲノム編集活性を示す超小型システムを導出 (2/2);改変型Cas12fとsgRNAを組み合わせたCasMINI. crisp_bio 2021-09-07.
- AsCas12fとsgRNAを改変したコンパクトなゲノム編集ツールを開発し、オールインワンAAVを介した臨床応用の可能性を提示. crisp_bio 2023-10-05.
- Un1Cas12f1への4重変異導入とsgRNAの最適化を経てコンパクトで高効率な塩基エディターを実現. crisp_bio 2024-09-06.;dUn1Cas12f1QM(SUminiABEとSUminiCBEへ展開)
- コンパクトなCas12f1から、ヒト細胞においてSpCas9に匹敵する編集活性を示すバリアント『enPspCas12f1』を導出. crisp_bio 2026-09-07.
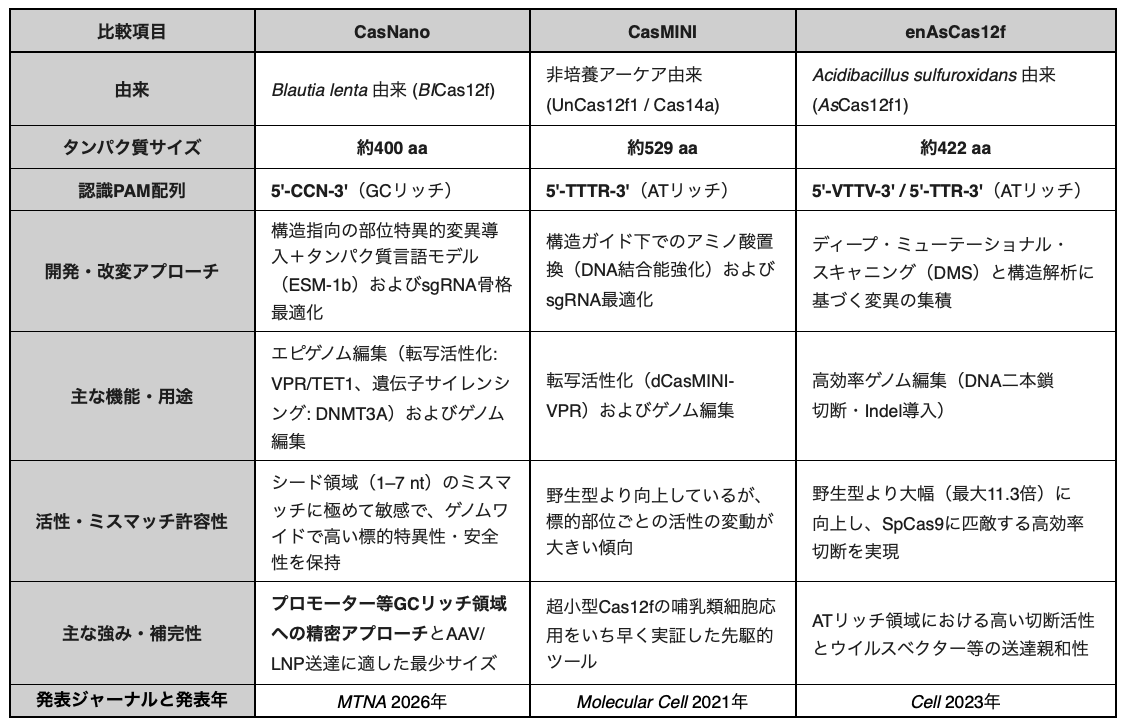
crisp_bioメモ:代表的なCas12f1改変体比較
[注] 以下の表は画像としてアップされており、クリックすると拡大表示されます。
出 典
"CasNano: An ultracompact CRISPR-Cas12f with a GC-rich PAM for epigenome editing with therapeutic potential" Dongkyeong Kim(1,4), Chia-Wei Huang(1,4) [..] Yi-Ting Tsai(1,5), Shawn Liu(3,5). Mol Ther Nucleic Acids. 2026-09-18. グラフィカルアブストラクト. https://doi.org/10.1016/j.omtn.2026.103106
- Epitor Therapeutics, Inc.
- Department of Medicine and Department of Systems Biology, Columbia University
- Department of Physiology and Cellular Biophysics, Columbia University
- Contributed equally
- Corresponding authors.


コメント