CRISPR-Cas13aとCRISPR Dx(CRISPR診断)
CRISPR-Cas13aシステムは、プログラム可能な標的認識能と独自のシグナル増幅特性を有することから、特にRNAを標的とする核酸検出のための汎用性の高いプラットフォームとして利用されてきました。
特定のCRISPR RNA(crRNA)に導かれたCas13aは、標的との結合に伴う構造変化を経てHEPNヌクレアーゼドメインを活性化させます。これにより、標的RNAのシス切断が引き起こされるとともに、周囲の非標的RNAに対するトランス切断活性を発揮します。
このRNA標的に依存するトランス切断活性を巧妙にシグナル増幅に活かすことで、RNA診断や分子バイオセンシングのツール [#1] が開発され、DNAを標的とするCas12aのトランス切断活性をベースにしたツール [#1] とともに、CRISPR技術をベースにした診断・センサーを意味するCRISPR Dxという呼称が生まれました。
特定のCRISPR RNA(crRNA)に導かれたCas13aは、標的との結合に伴う構造変化を経てHEPNヌクレアーゼドメインを活性化させます。これにより、標的RNAのシス切断が引き起こされるとともに、周囲の非標的RNAに対するトランス切断活性を発揮します。
このRNA標的に依存するトランス切断活性を巧妙にシグナル増幅に活かすことで、RNA診断や分子バイオセンシングのツール [#1] が開発され、DNAを標的とするCas12aのトランス切断活性をベースにしたツール [#1] とともに、CRISPR技術をベースにした診断・センサーを意味するCRISPR Dxという呼称が生まれました。
POCTとしてのCRISPR Dx(バイオセンサー)への期待と課題
CRISPR Dxには当初から臨床現場での迅速・簡易・安全な検査(POCT:Point of Care Testing)への展開が期待されていましたが、実用化には、操作の複雑さとコンタミネーションのリスクが課題になっていました。
- これまでのCas13aをベースとするバイオセンサーの基本的な構成:「RPAやLAMPなどの等温核酸前増幅」+「CRISPR-Cas13aシステムによる標的認識とシグナル増幅」の2段階
- ワンポット化の必要性:2段階アプローチでは反応チューブを開閉する際にエアロゾルによる交差汚染(偽陽性)が起きやすいことが、自動化・簡便化の妨げになります。そのため、近年は「前増幅反応とCRISPR検出反応を同一容器で干渉させずに完結させるワンポット化」の研究開発がCRIPR Dx分野のトレンドになっていました。
西北農林科技大を主とする中国研究チームによるブレイクスルー
- 従来の感度向上策の限界:これまでのCas13aバイオセンサーの感度向上や標的選択性向上の工夫は、主に「前増幅効率の改善」か「crRNAのスペーサー領域(標的核酸と相補的に結合する部分)の改変 [#2](ヘアピン型スペーサーの導入 [#3] や短縮 [#4] など)」に偏っていました。しかし、標的核酸を認識すべきスペーサーの改変には、設計の自由度に限界がありました。
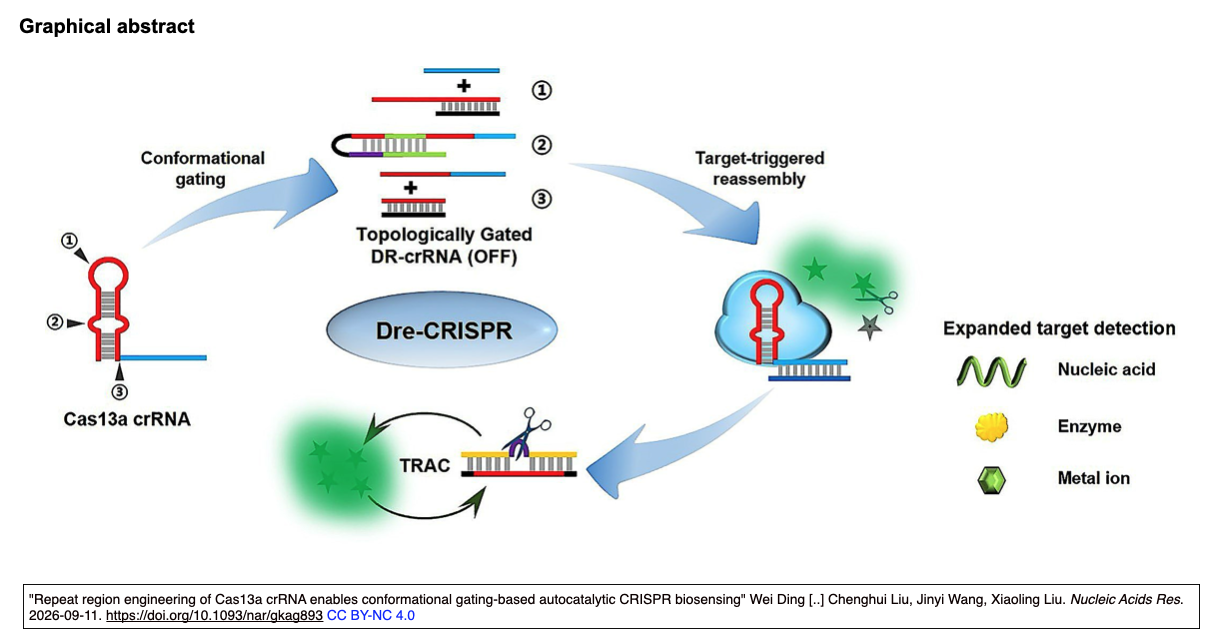
- DR(ダイレクトリピート)領域の「開拓」:crRNAはスペーサーならびにCas13aと強固に結合するスキャフォールドで構成されています。スキャフォールドはDRで形成されていますが、長年「改変できない固い骨格」と考えられていました。研究チームは、このDR領域を分断・挿入(トポロジー改変)してもCas13a活性が保たれるという柔軟性(可塑性)を発見しました。
- 自己触媒回路による劇的な感度向上:DR領域を分割し「無修飾DNAブロッカーでCas13a活性をOFFにし、標的が存在したときだけONにする」スイッチを作製。これを自己増幅型(自己触媒)回路「Dre-CRISPR」へと統合することで、前増幅無しで非増幅システムの約200万倍(2 x 10⁶倍)という飛躍的な感度向上を達成しました。
- シンプルなDre-CRISPR:この回路は、crRNAのDR領域を物理的に分割し、「市販の無修飾の単鎖DNA(ssDNA)」をブロッカーとして結合させるだけで完成します。標的分子が存在するとssDNAブロッカーが外れ野生型のDR構造が復元され、スイッチがOFFからONに入ります。研究チームはこの機構ならびに改変型crRNAをそれぞれ "Conformational gating"ならびに"Topologically Gated DR-crRNA"と称しています
- グラフィカルアブストラクト引用下図参照(クリックすると拡大表示されます):下図の右上の矢印が、OFF状態(ブロッカー結合)からON状態(ブロッカー除去・DR復元)の流れを指しています。
Dre-CRISPRの拡張性
Topologically Gated DR-crRNAを採用したことで、「crRNA内のスペーサーと標的RNAとの相補性」を介した標的認識を、「ブロッカー除去」スイッチによる標的認識に変えたことによって、RNA以外の分子への展開が容易になりました:
microRNA(例: miR-21)の検出
- 変換技術: トーホールド媒介鎖置換反応(Toehold-mediated strand displacement)
- 機構: ブロッカーDNAにトーホールド(足場)領域を設けておき、微量のmiR-21が結合すると鎖置換反応が起きてブロッカーが物理的に引き剥がされます。これによりスプリットDR構造が復元(ON)します。こうして、対象分子がCas13aトランス切断活性へのシグナルに変換されます。
酵素活性(例: ウラシルDNAグリコシラーゼ: UDG)の検出
- 変換技術: 特異的基質塩基(ウラシル)を組み込んだブロッカー + 二次切断酵素(APE1)
- 機構: ブロッカーDNA中にウラシル(U)塩基を組み込んでおきます。試料中にUDGが存在するとウラシルが脱去されてAPサイト(塩基欠去部位)が生じ、それをDNA切断酵素(APE1)が認識してブロッカーを切断・断片化させ、DR構造が復元(ON)します。
重金属イオン(例: 鉛イオン: Pb2+)の検出
- 変換技術: 金属依存性DNAザイム(DNAzyme)構造の組み込み
- 機構: Pb2+が存在する環境下でのみ切断活性を示すDNAザイム配列をブロッカー構造内に配置します。Pb2+の結合によってブロッカー自体が自己切断を起こして解体され、crRNAから脱離し、DR構造が復元(ON)します。
crisp_bioメモ:
- Dre-CRISPRは、野生型に加える改変がシンプルであることに加えて、検出対象に応じた機能性核酸モジュール(アプタマー、DNAザイム、酵素基質配列など)をブロッカー側へ組み込むだけで、標的ごとにCas13aシステム全体を再設計する手間がなく、極めて高い設計拡張性を備えていると思われます。
- CRISPR Dxについては、標的分子に対する反応系からシグナルの読み出しまで、ありとあらゆる技術が試されたように思っていたところ、「思い込みを排した」アプローチからブレイクスルーが実現しました。
[#] 参考crisp_bio記事
- CRISPRによる核酸検出・診断(DETECTRとSHERLOCK). crisp_bio 2018-02-23/2020-02-15更新.
- CRISPRバイオセンサーを支えるガイドRNAをプログラムする. crisp_bio 2026-06-20.
- スペーサをヘアピン型にするとCas13aバイオセンサーの性能が向上する. crisp_bio 2021-02-11.
- CRISPR-Cas13aを用いた一塩基ミスマッチに対する感度が高い超特異的RNA検出のための新たな設計戦略. crisp_bio 2023-12-06.
- CRISPR-Cas13a RNPにおけるcrRNAのシード領域のマッピングと特異性向上に向けた速度論からのアプローチ. crisp_bio 2026-05-13.
出 典
"Repeat region engineering of Cas13a crRNA enables conformational gating-based autocatalytic CRISPR biosensing" Wei Ding(1) [..] Chenghui Liu(2,3), Jinyi Wang(1,3), Xiaoling Liu(1,3). Nucleic Acids Res. 2026-09-11. https://doi.org/10.1093/nar/gkag893
- College of Chemistry and Pharmacy, Northwest A&F University, Yangling, Shaanxi 712100, P.R. China
- Key Laboratory of Applied Surface and Colloid Chemistry, Ministry of Education; Key Laboratory of Analytical Chemistry for Life Science of Shaanxi Province; School of Chemistry & Chemical Engineering, Shaanxi Normal University, Xi’an, Shaanxi 710119, P.R. China
- Corresponding authors


コメント