~ プラズモニクス(plasmonics)を提唱したスタンフォード大学Mark Brogersma教授と、光吸収分子を介した生体透明化技術(Science, 2024)のパイオニアとして知られているGuosong Hong同大准教授を共同責任著者とするCell 誌掲載論文から「集束超音波でコンパクトな光スイッチ型Cas12fシステムを遠隔操作する」手法が紹介されました ~
2026-10-05 Cell誌掲載論文がNature 誌Rsearch Highlight記事に取り上げられました。その副題の一部(『光と音で制御する』)を借りて、ブログ記事タイトルと副題を改訂し、以下に、書誌情報と、Cell論文がわかり易くコンパクトにまとめられているテキストを引用しました。
- 特定の細胞のゲノムだけを編集し、他の細胞には手を加えないようにすることで、望ましくない副作用のリスクを低減できる可能性があります。これまでにも、光に応答して遺伝子編集ツールをオンにするシステムの研究は行われてきましたが、そうした手法を生体内で利用するのは困難な場合がありました。
- この課題を克服するため、研究チームは、光を吸収すると遺伝子編集酵素を活性化させるタンパク質を設計しました。研究チームはこのタンパク質と酵素をウイルスに封入し、マウスに投与しました。さらに、超音波に応答して発光する特殊なセラミック粒子(暗闇で光るおもちゃなどに使われるものと同様の素材)をマウスに注入しました。
- 最後に、遺伝子編集を活性化させたい領域に集束超音波を照射しました。
- その結果、骨格筋、肝臓、脳の標的領域において、この手法が有効に機能することが確認されました。
[出典] "Location, location, location: how to edit genes only in the cells you want". Nature 2026-10-02. https://www.nature.com/articles/d41586-026-03037-8
2026-10-01 Cell 誌2026日9月28日刊行論文に準拠した初稿
背 景
CRISPR-Cas9システムから始まるゲノム編集は、二本鎖切断を必要としない塩基エディター(BE)やプライム編集(PE)、ゲノムを改変しないCRISPRa/iやエピゲノム編集、さらには遺伝子全長を対象とする大規模編集技術へと拡充の一途をたどってきました。こうした強力なツールをヒトの医療に展開するには、生体内(in vivo)において特定の時期や部位に限定して活性を発揮するモードが求められます。理想的には、アデノ随伴ウイルス(AAV)による細胞型特異的な送達に対応し、かつ、体外から制御可能なことが、望まれます。しかし、それには2つの技術的障壁が立ち塞がっていました:
- パッケージング容量の壁:制御可能なCRISPR-Cas系をAAV1粒子に収める。AAVの容量は約4.5kbしかなく、最も一般的なSpCas9(4.1kb)やSaCas9(3.2kb)に制御ドメインを付加すると容量超過し、2ベクター分割が必要になる(両方が導入された細胞でしか機能せず効率低下)。
- 深部組織への非侵襲的活性化:光は唯一空間制御可能なモダリティですが、深部組織への光送達は散乱・吸収で妨げられ、光学素子やLED埋込は侵襲的です。
今回のCell誌刊行論文はこの両方を、タンパク質工学(コンパクトなCas12fの光応答化)と 材料科学(集束超音波(FUS)誘起の機械発光ナノ粒子MLNT)を組み合わせることで解決しています。[論文の共同責任著者の一人スタンフォード大学Michael Z Lin教授のX投稿を以下に引用]
Today our lab is excited to share a new study in Cell: “Non-invasive control of gene editing in vivo by photoswitchable Cas12f and focused ultrasound.”
— Michael Lin, MD PhD 🧬 (@michaelzlin) September 28, 2026
We engineered a compact CRISPR system that can be activated at specific locations in the body using focused ultrasound (🧵) pic.twitter.com/XRq3xYu0eY
主要な構成因子
1. psCasMINI:単一AAVに収まる光スイッチ型(photoswitchable)Cas12f
- CasMINI(529aa、1.6kb、SpCas9の半分以下)のN末端に、光解離性二量体緑色蛍光タンパク質pdDronpa (photodissociable dimeric Dronpa) を融合。
- CasMINI-sgRNA複合体は非対称ホモ二量体を形成し、両鎖のN末端がDNA結合界面付近でスペーサー配列を挟むように位置する構造的特徴を利用。暗所ではpdDronpaが二量体化してDNAアクセスを遮蔽(ケージ)し、シアン光(~500nm)照射でpdDronpaが解離してケージが外れ、編集活性が回復
- リンカー長を系統的にスクリーニングし、長さ19aaリンカーのpdDronpa-CasMINI融合体(psCasMINI、779aa・2.3kb)が最良(光照射で13.7倍誘導、非融合CasMINIと同等の編集効率8.9%)。
- AAVパッケージ容量4.5kbに対して、U6-sgRNA・polyAを含めても約1.6kbの余裕を残す。
2. In vivoでのLED制御
- AAV9でLSL-AkaLucレポーターマウスの骨格筋(前脛骨筋)へ導入。
- psCasMINIは非照射時のベースライン発光がCasMINI非融合体比14.9分の1に抑制され、シアン光(15mW/cm²)照射で約11倍増加。
- ワイヤレスLED(磁気コイル給電)を用いた片側の脚のみへの局所照射により、左右で時期をずらした部位特異的編集(各10.7~13.0倍)を実証。
3. FUS誘起機械発光による深部組織の非侵襲制御
- Sr₄Al₁₄O₂₅:Eu,Dy(SAO)ナノ粒子(MLNT)はUV充電後、機械的刺激(超音波)でシアン発光(~500nm)する性質を持ち、pdDronpaの吸収スペクトルと重なります。
- MLNTを血中に全身投与し、標的部位に1.5MHzの集束超音波(FUS)を照射することで局所的に発光させ、psCasMINIを活性化。腹部UV照射での体内再充電を繰り返すことで、13倍の発光増加を達成。
- 左右の脚を異なるタイミングでFUS刺激することで、時空間的に独立した部位特異的編集を実証しました。
4. 光応答性・Cas12fバリアントの改良
- 新しいCas12f変異体、eCas12f1とAsCas12f-HKRA(いずれもCasMINIより高活性)に、pdDronpaに高速光スイッチ変異(V157G・K45I)を導入したpdDronpa2(ps2)を組み合わせ。
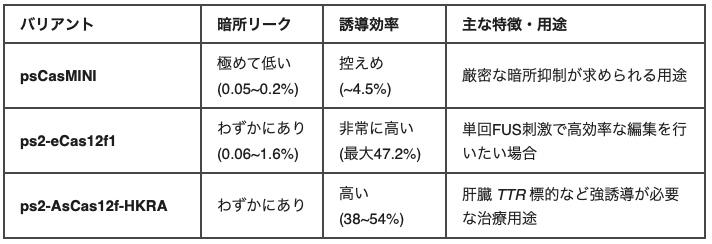
- ps2-eCas12f1が最高性能を示し、生体内ディープシークエンシングで照射後47.2%のindel形成率(非照射時1.5%)を達成、これは非融合eCas12f1と同等。
- 重要な改良点として、ps2バリアントはUV再充電を伴わない単回のFUS+MLNT刺激のみで、4回刺激した従来のps1-CasMINIを上回る活性化を達成しました(再充電回数が4分の1になったことは臨床現場での運用における意義大)。
実証と評価
1. 脳での空間特異的編集
1. 脳での空間特異的編集
- 血液脳関門通過性AAVカプシド(CAP.B10)を用い、静脈内投与でps2-CasMINIを脳に送達。外部シアン光照射でps2-CasMINIは非融合CasMINIと同等レベル(12.6倍増加)まで活性化(参考:ps1では34%)。
- FUS+MLNTにより片側の大脳半球のみを標的化した局所編集、さらに左右半球を日を分けて逐次編集することにも成功。
2. 内在性治療標的遺伝子(TTR)での実証
- 遺伝性トランスサイレチンアミロイドーシスの治療標的である肝臓のTTR遺伝子を、肝特異的プロモーター(HCRhAAT)で駆動するAAV8を用いて標的化。
- 非刺激条件ではps2バリアントは血漿TTRレベルをほとんど低下させず(indel頻度0.05~1.60%)、光またはFUS刺激後に非融合体と同等レベルまでTTRが低下(ps2-AsCas12f-HKRAが最も強い誘導性を示し、光照射で38~54%の編集効率)。
- 光照射・FUS刺激いずれも肝毒性(AST/ALT)を誘発せず、脳でも組織損傷・グリア活性化は認められず。
3. オフターゲット非検出
- GUIDE-seq解析では、いずれのpsCas12fバリアントもオフターゲット編集は検出されず、これはCas12fファミリーが元来Cas9系より高特異性であることと整合します。光スイッチ化によりベースライン活性がさらに約2桁(100倍)抑制されました。
特徴と課題
- 設計原理の一般性:今回のpdDronpa融合戦略はCasMINI以外のCas12fスキャフォールド(eCas12f1, AsCas12f-HKRA)にも容易に拡張可能であることが示されており、Cas12fが本質的にホモ二量体を形成する性質を活かした設計です(ヘテロ二量体型光スイッチでは2遺伝子発現が必要になり、この利点が失われる)。
- トレードオフ:psCasMINIは最もタイトな暗所抑制(indel 0.05~0.2%)を示す一方、誘導効率は控えめ(~4.5%)。eCas12f1・AsCas12f-HKRAはリーク(暗所活性0.06~1.6%)がやや高いものの、誘導効率は大幅に優れる、という明確なトレードオフが存在する。したがって、用途に応じたスキャフォールド選択が重要です。[以下の比較表参照(画像としてアップロード、クリックすると別ウインドウで拡大表示されます]
- 今後の応用:触媒不活性型Cas12fにエフェクタードメインを融合すれば、転写制御やベ塩基編集への拡張も原理的に可能(検証は必要)。組織特異的AAVカプシドやプロモーターとの組み合わせで、さらなる特異性向上。
- 留意点:長期のAAV発現下での累積編集・免疫原性は未評価。FUSの空間分解能は集束体積・MLNTの生体内分布・組織の光散乱に依存するため、編集境界の精密な画定にはさらなる研究が必要。
出 典
"Non-invasive control of gene editing in vivo by photoswitchable Cas12f and focused ultrasound" Daesun Song(1,2) [..] Guosong Hong(3,9), Michael Z. Lin(1,2,8,9,11). Cell 2026-09-28. https://doi.org/10.1016/j.cell.2026.09.005
- Department of Neurobiology, Stanford University School of Medicine, Stanford, CA, USA
- Department of Bioengineering, Stanford University, Stanford, CA, USA
- Department of Materials Science and Engineering, Stanford University, Stanford, CA, USA
- Department of Chemistry, Aarhus University, Aarhus, Denmark
- Interdisciplinary Nanoscience Center (iNANO), Aarhus University, Aarhus, Denmark 6Division of Oncology, Department of Medicine, Stanford University School of Medicine, Stanford, CA, USA
- Department of Bioengineering, University of California at Berkeley, Berkeley, CA, USA
- Department of Chemical and Systems Biology, Stanford University School of Medicine, Stanford, CA, USA
- Corresponding authors
- Lead contact


コメント